


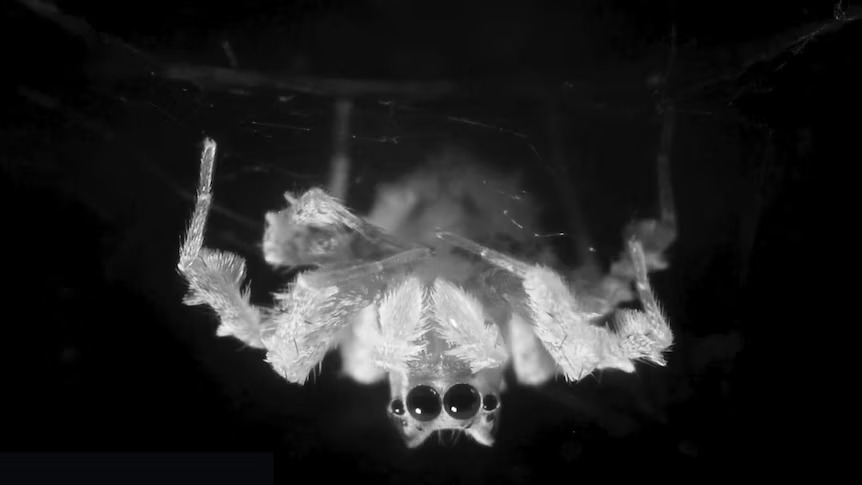
Тут нет законов природы, а точные науки далеки от точности. Тут нет идентичности, нет логики, нет смысла, а может он и есть, но столь туманный, что осознать его не дано даже самым выдающимся философом. Это место, где многие ищут вдохновение, раскрывают потаенные желания или переосмысливают свое бытие. Сон — это удивительное состояние, которое весьма распространено среди обитателей нашей планеты. Однако, по большей степени сон относят к позвоночным. Крайне мало известно о том, могут ли другие организмы видеть сны. Ученые из Боннского университета (Германия) провели исследование, в ходе которого установили, что пауки демонстрируют определенные аспекты сновидения, схожие с человеческими. Как ученые это выяснили, какими типами сна обладают пауки, и считают ли они мух перед сном? Ответы на эти, но может не все, вопросы мы найдем в докладе ученых.
Основа исследования
Недавние открытия в области исследований сна, в том числе обнаружение у пауков состояния, подобного фазе быстрого сна (REM сон), выделение двух стадий сна у осьминогов, выявление нейронных признаков стадий сна у плодовых мушек, а также свидетельства сна у книдарий, плоских червей и нематод, подчеркнули разнообразие форм сна у беспозвоночных. Эти данные указывают на наличие глубоких параллелей со структурой сна, которая ранее была известна только у млекопитающих и птиц. К таким проявлениям относятся периоды отсутствия активности (у плодовых мушек), сопровождающиеся мышечными подергиваниями и движениями глаз (у пауков и осьминогов), а также изменение окраски за счет работы хроматофоров (у осьминогов) — все это напоминает непроизвольные движения, наблюдаемые во время фазы быстрого сна у млекопитающих. Данные открытия подтвердили значимость поведенческих наблюдений за сном, опирающихся на общепринятое определение, которое включает следующие критерии:
-
принятие характерной позы;
-
поведенческий покой;
-
обратимость состояния;
-
повышенный порог реакции на внешние раздражители.
Кроме того, был добавлен функционально важный пятый критерий — наличие гомеостатической регуляции сна.
Сон регулируется двумя взаимосвязанными процессами: гомеостатическим механизмом, который накапливается во время бодрствования и ослабевает во время сна (процесс S), и циркадным ритмоводителем, который синхронизирует время сна с суточными циклами окружающей среды (процесс C). В рамках этой двухпроцессной модели гомеостатическая регуляция проявляется в виде компенсаторного увеличения продолжительности сна после его дефицита, тогда как циркадный контроль поддерживает устойчивые ритмы покоя и активности, синхронизированные с внешними датчиками времени, такими как свет и температура. Доказательство того, что сон подвергается активной регуляции и ритмической организации у различных групп живых организмов, имеет решающее значение для понимания того, когда возник сон и как его функции могли диверсифицироваться в зависимости от экологических и сенсорных условий.
Электрофизиологические показатели, такие как электроэнцефалограммы (EEG от electroencephalogram) и локальные полевые потенциалы (LFP от local field potential), по-прежнему считаются золотым стандартом для определения сна и его стадий у животных. Однако для большинства беспозвоночных применение этих методов пока невозможно. Исследования сна у животных долгое время тормозились из-за того, что ученые ориентировались исключительно на критерии, разработанные для млекопитающих, игнорируя при этом наблюдения, которые отклонялись от данных критериев или не могли быть ими описаны. В результате изученность сна у беспозвоночных крайне низка. Зачастую сам факт его существования у этих животных даже не принимается во внимание, что создает значительный пробел в знаниях о различных группах живых организмов. Чтобы лучше понять происхождение, функции и эволюцию сна, необходимо расширить таксономический охват исследований. При этом следует учитывать как общие черты, так и специфические для отдельных эволюционных линий различия в проявлениях сна — только так можно выявить универсальные закономерности.
Для выявления и описания сна у более широкого круга таксонов ученые опираются на поведенческие критерии. Такой подход позволяет проводить сравнительные исследования, касающиеся функций и эволюции сна в животном мире. В центре данного исследования — сон у пауков. Это группа организмов, которая до сих пор не была охвачена исследованиями сна.
Пауки представляют собой перспективный объект для изучения и описания сна у членистоногих, не относящихся к классу насекомых. Это древняя группа животных, отличающаяся значительным экологическим и сенсорным разнообразием, что открывает широкие возможности для сравнительных исследований связи сна с сенсорной экологией и поведением. Несмотря на то что еще в ранних работах Тоблера было высказано предположение о наличии у скорпионов состояний, подобных сну, систематическая проверка того, соответствуют ли пауки (и другие хелицеровые) полному набору поведенческих критериев сна, до сих пор не проводилась. В недавнем исследовании, посвященном паукам-скакунчикам (Evarcha arcuata), было описано регулярное ночное подергивание конечностей и движения сетчатки глаз — явления, напоминающие фазу быстрого сна (REM) у позвоночных.
Опираясь на ранее проведенные исследования, в которых описывался отдых у пауков-скакунчиков, ученые поставили перед собой задачу выяснить, являются ли эти эпизоды, похожие на REM-фазу, частью более широкого, регулируемого состояния сна, чтобы получить полноценное поведенческое подтверждение наличия сна у данных животных. В качестве объекта исследования ученые выбрали паука-скакунчика Portia fimbriata — дневной вид из тропических районов Квинсленда (Австралия), обладающий сложными когнитивными способностями и полагающийся преимущественно на зрение. Эти пауки могут круглогодично содержаться в лабораторных условиях, не впадая в диапаузу. Характерная поза покоя в ночное время и образ жизни, в котором ключевую роль играет зрение, делают их подходящим объектом для строгого поведенческого анализа сна.
Ученые разработали комплексный подход для проверки поведенческих критериев сна у пауков, включающий:
-
отслеживание циркадной активности для оценки того, регулируются ли циклы «покой — активность» эндогенно (процесс C);
-
количественный анализ структуры сна, позволяющий охарактеризовать организацию периодов покоя и состояний, подобных фазе быстрого сна (REM-подобных состояний), а также определить характерную для данного вида позу во время сна;
-
оценку порога возбудимости в зависимости от состояния организма — проверку того, снижается ли реакция на внешние раздражители в периоды покоя (включая REM-подобные состояния у пауков), что является ключевым критерием, отличающим сон от простого отдыха;
-
эксперименты по прерыванию сна для выявления гомеостатической компенсации (эффекта «отдачи»), свидетельствующей о наличии регуляторного контроля (процесс S).
С помощью этого комплексного подхода ученые стремились получить всестороннее поведенческое подтверждение наличия сна у пауков и обосновать возможность использования пауков в качестве модельных организмов для сравнительных исследований эволюции и функций сна.
Результаты исследования
Для характеристики циркадных ритмов и сна у P. fimbriata ученые применили ряд взаимодополняющих поведенческих методов, включая отслеживание локомоторной активности, детальный анализ структуры сна, оценку порога пробуждения и протоколы, направленные на нарушение сна. Все эксперименты проводились в контролируемых условиях окружающей среды. В данной работе ученые использовали термин «окно сна» для обозначения продолжительных периодов поведенческого покоя, которые включают собственно сон, эпизоды сна, напоминающего REM-сон, а также состояние спокойного бодрствования. Начало «окна сна» определяется моментом принятия позы покоя, сопровождающимся прекращением движения. Завершение «окна сна» фиксируется в момент возобновления двигательной активности в конце ночного периода.
Сначала ученые проанализировали ритмы сна и бодрствования, используя отсутствие движения как показатель сна, а локомоторную активность — как показатель бодрствования. Затем они исследовали структуру сна с высоким временным разрешением, учитывая такие параметры, как поза, неподвижность и поведение, напоминающее REM-сон, чтобы определить состояния, с наибольшей вероятностью соответствующие сну. Наконец, были проведены измерения порога пробуждения и эксперименты по прерыванию сна, чтобы проверить, связаны ли REM-подобные состояния со снижением уровня бдительности, а также продемонстрировать гомеостатическую регуляцию. Это позволило функционально подтвердить, что наблюдаемые состояния покоя действительно являются сном.
Эндогенная циркадная регуляция активности
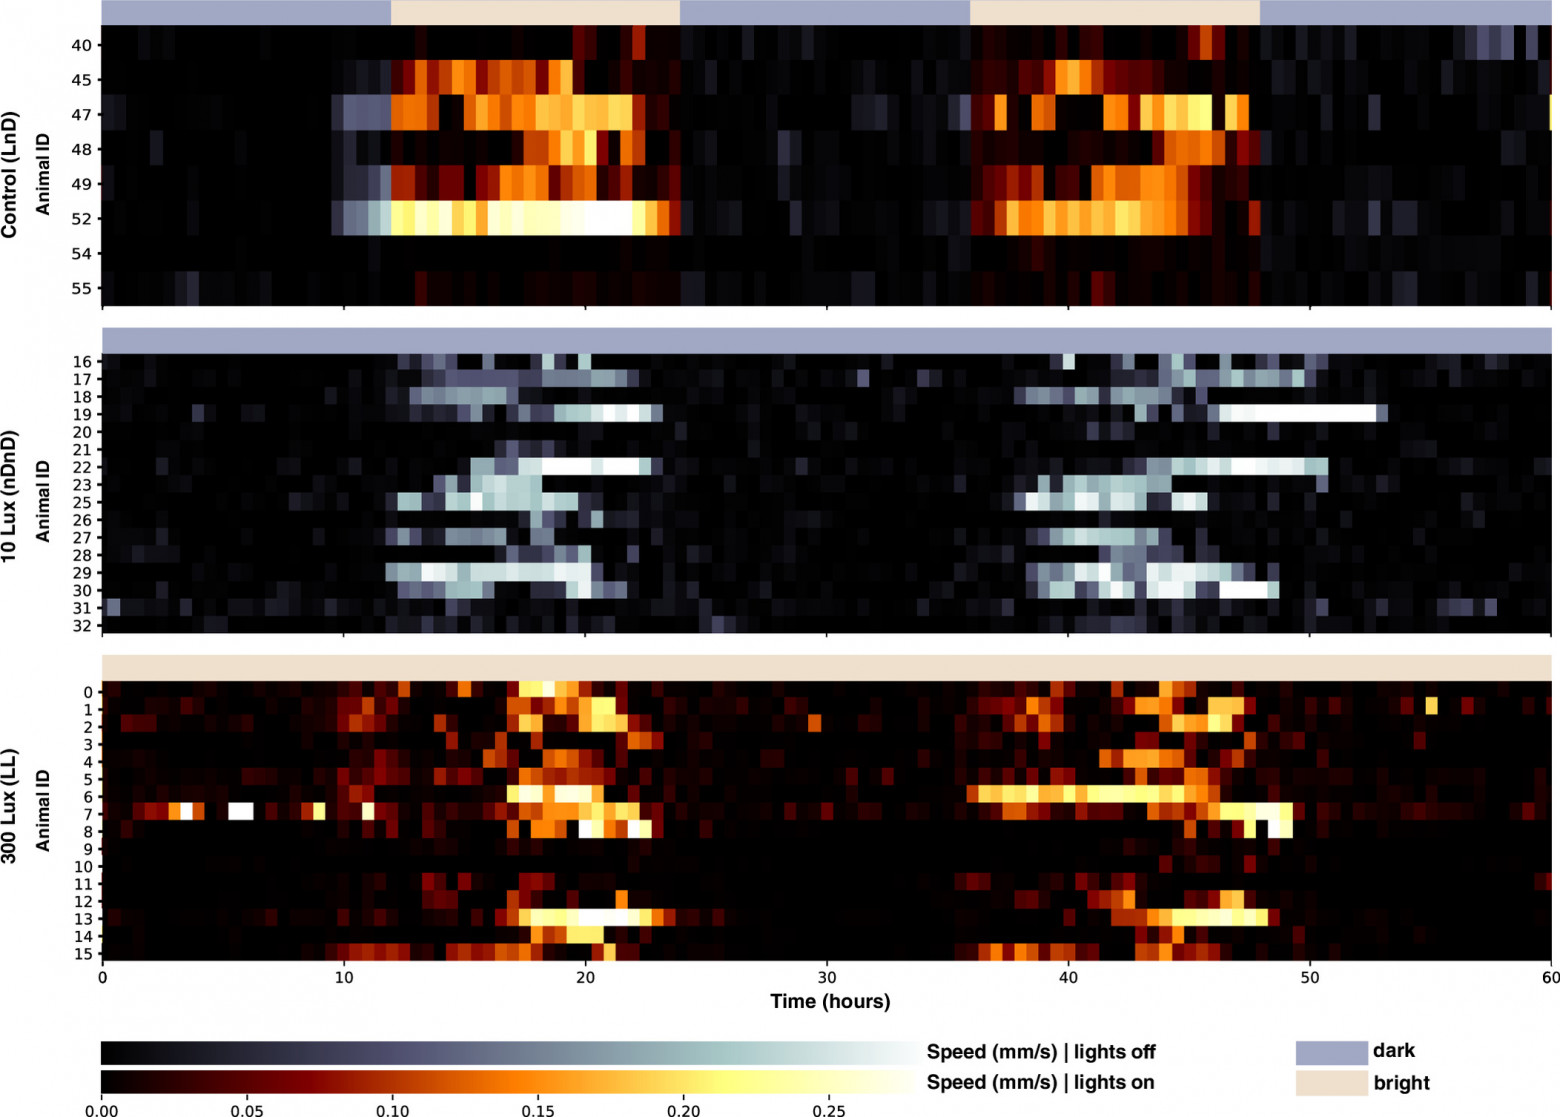
Характер активности при различных режимах освещения на протяжении всего периода непрерывной регистрации (60 часов) представлен ниже в виде тепловых карт. В условиях режима «12 часов света — 12 часов почти полной темноты» (LnD от light–near-dark) у большинства пауков наблюдался четкий суточный ритм: основная часть активности приходилась на световую фазу, тогда как в фазе, близкой к полной темноте, отмечались длительные периоды покоя.
Изображение №1
Сходное чередование периодов повышенной и пониженной активности наблюдалось и в условиях постоянного слабого освещения (nDnD от near-darkness), несмотря на отсутствие внешних переходов между светом и слабым освещением. Периоды отсутствия активности оставались относительно целостными, а периоды повышенной активности повторялись с суточным интервалом на протяжении всего периода регистрации.
В условиях постоянного освещения (LL от light) активность поначалу была более нерегулярной, особенно в течение первого циркадного цикла (особь № 7). В дальнейшем вновь проявилась закономерность, при которой периоды высокой активности чередовались с периодами низкой. Однако по сравнению с условиями LnD и nDnD, при постоянном освещении (LL) периоды низкой активности были менее выраженными (менее целостными), а сама активность — более фрагментированной на протяжении циркадного цикла.
В рамках всех экспериментальных условий у отдельных особей наблюдались различия в общем уровне активности. Некоторые пауки демонстрировали более длительные периоды практически полной неподвижности, в то время как другие были стабильно более активными (то есть передвигались с большей скоростью). Несмотря на эти индивидуальные различия, общие временные закономерности чередования периодов низкой и высокой активности сохранялись при всех вариантах воздействия.
Архитектура сна: консолидированный сон и REM-подобные состояния, у P. Fimbriata
Поведенческий анализ, основанный на непрерывной инфракрасной видеосъемке, выявил признаки дневной активности у пауков рода Portia. В течение дня Portia демонстрировали поведенческий профиль, существенно отличающийся от ночного. Хотя они часто подолгу оставались неподвижными, их вряд ли можно было назвать полностью неактивными: даже в состоянии кажущегося покоя они продолжали активно следить за окружающей обстановкой — поворачивались, осматривались или меняли позу в ответ на визуальные стимулы. Они также передвигались, плели паутину или занимались чисткой тела, сохраняя уровень бдительности и вовлеченности, характерный для их сложного хищнического образа жизни. Эта непрерывная, пусть и малоинтенсивная, целенаправленная активность контрастировала с их поведением в ночное время.
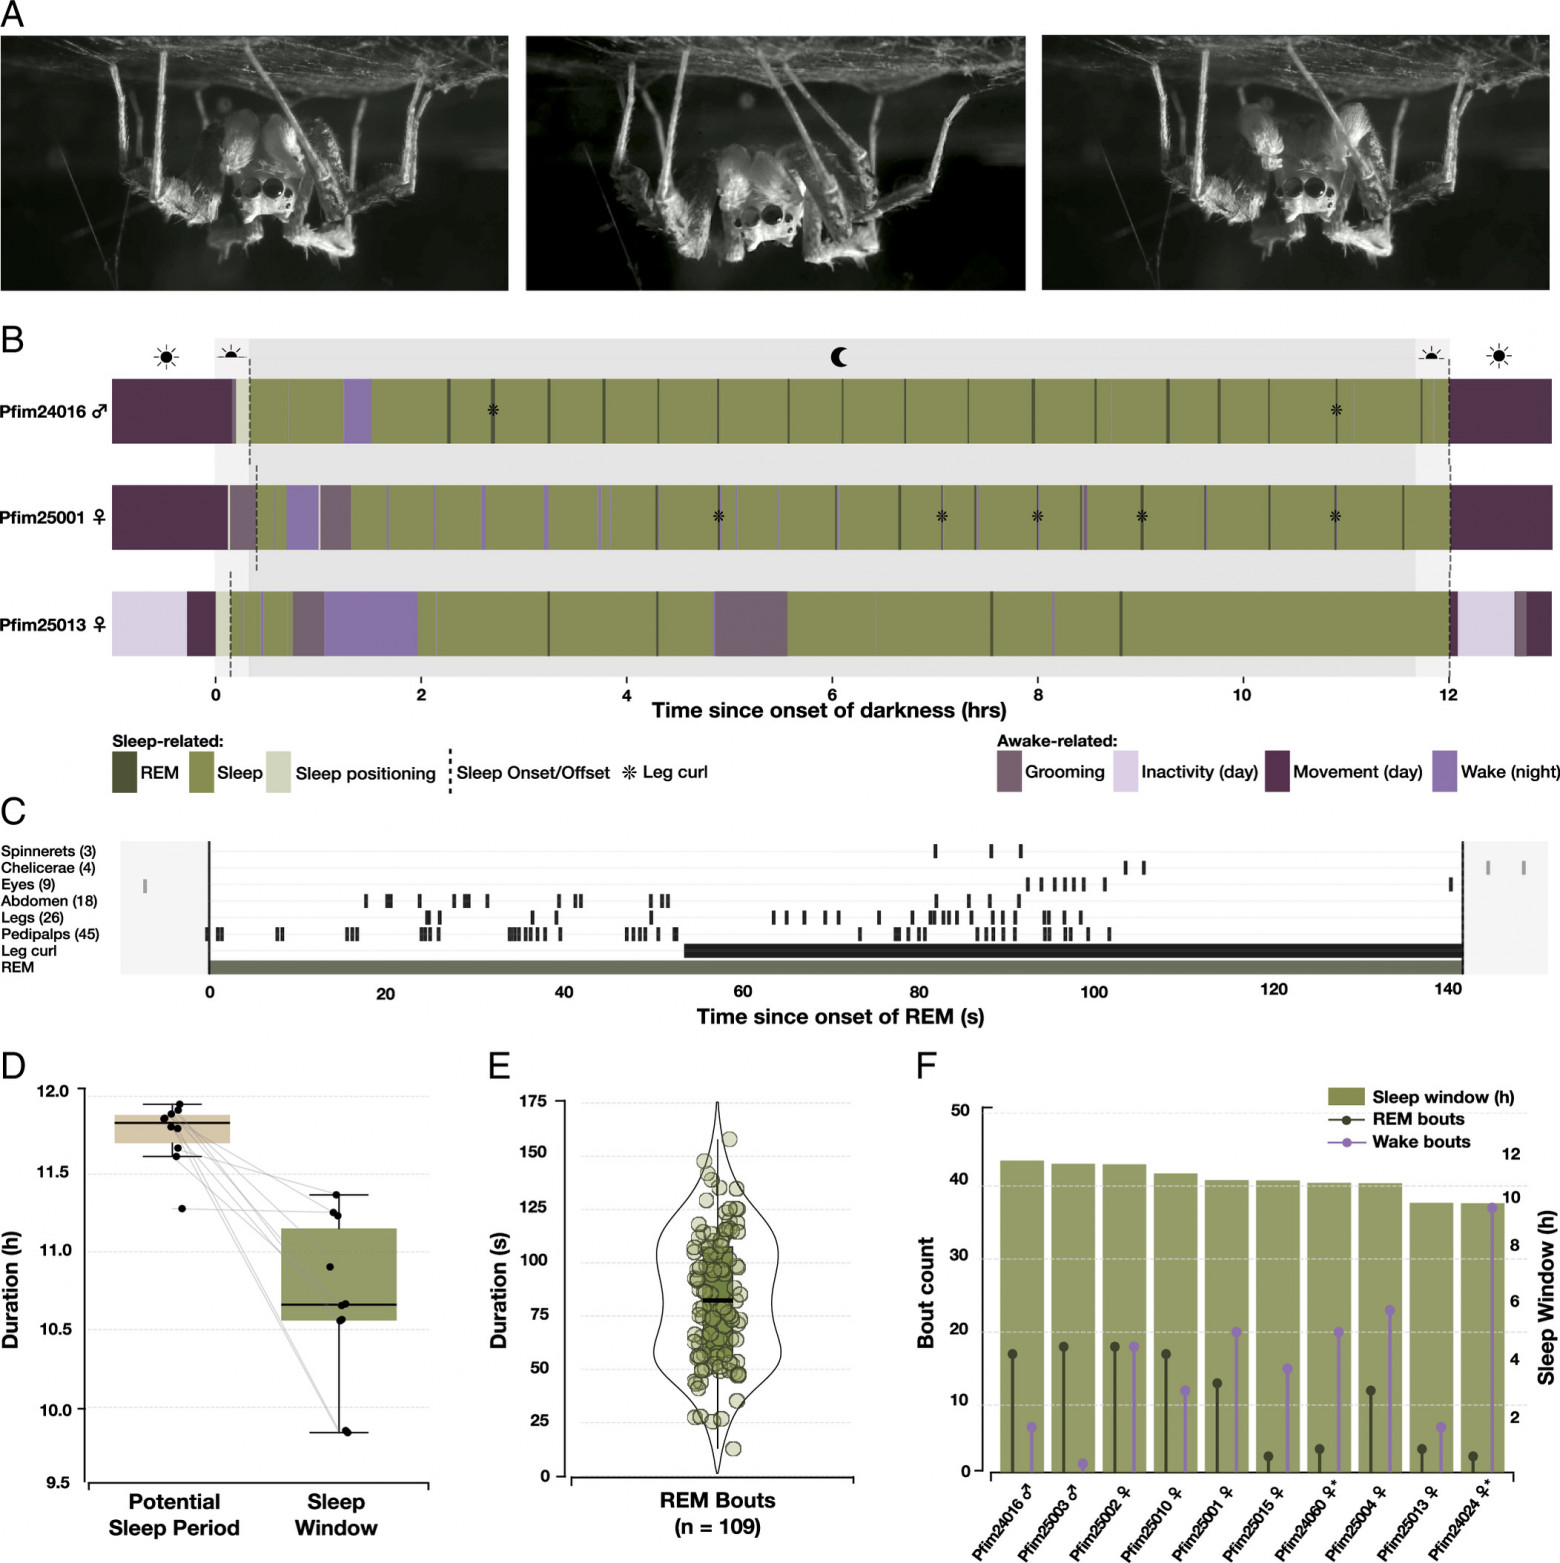
Переход ко сну сопровождался постепенным прекращением подобной деятельности. С наступлением ночи пауки начинали искать место для сна (зачастую это было убежище из паутины) и подолгу чистили свое тело. Устроившись, они принимали характерную позу для сна. В отличие от E. arcuata, которые отдыхают в подвешенном состоянии, Portia располагались неподвижно на горизонтальной паутинной платформе: дорсальная часть просомы (головогруди) была обращена вниз, а опистосома (брюшко) постепенно провисала — едва заметное изменение, которое становилось очевидным при просмотре видео (видео №1). В этой позе педипальпы были подтянуты внутрь и плотно прижаты друг к другу под просомой, что отличается от их положения во время бодрствования, когда они расправлены и направлены в стороны (2A). Такое положение сохранялось на протяжении большей части ночи.
Видео №1
У всех особей наблюдался ночной покой, характеризующийся выраженными периодами поведенческой неактивности (2B). Пауки придерживались стабильного «окна сна» (от засыпания до пробуждения), которое практически совпадало с темной фазой 12-часового цикла «свет-темнота» (2D): засыпание обычно происходило в первые 30 минут темноты (14.0 ± 12.4 мин), а пробуждение — с началом освещения (−0.3 ± 2.7 мин). Период сна был в значительной степени непрерывным: наблюдались лишь кратковременные пробуждения (1.3 ± 0.8 эпизода бодрствования в час), связанные со сменой позы или уходом за собой (всего 13.2 ± 8 эпизодов бодрствования за ночь; средняя продолжительность одного эпизода — 324.7 ± 322.3 с; количество эпизодов ухода за собой — 8 ± 5 за ночь; 2F). Несмотря на отдельные перерывы, сон занимал бо́льшую часть ночи (среднее значение ± стандартное отклонение: 10.7 ± 0.5 часа; 2D).
Изображение №2
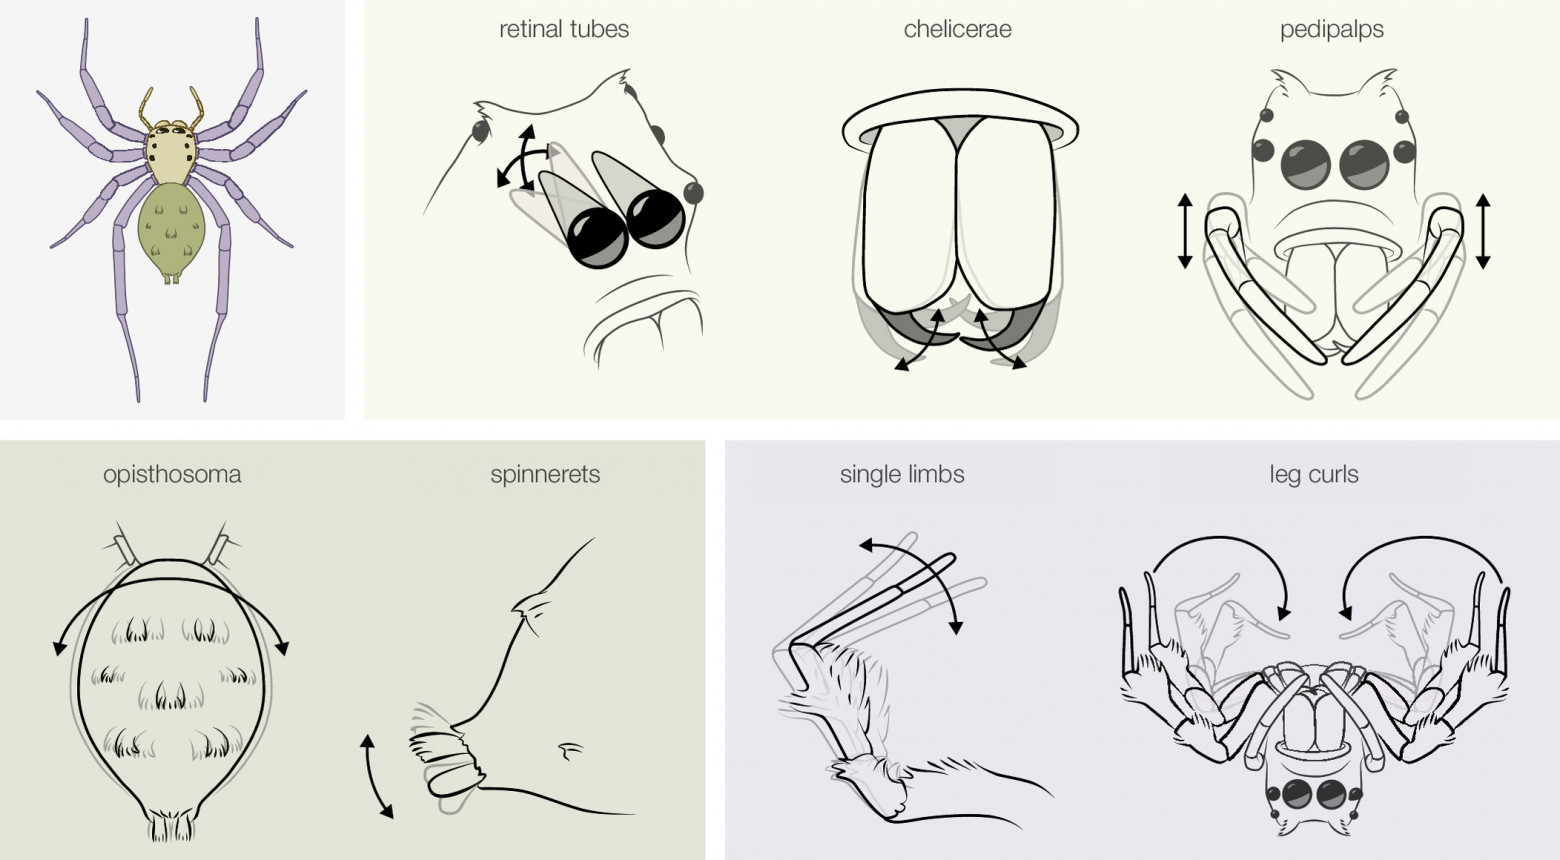
У пауков наблюдалось чередование длительных периодов поведенческого покоя с короткими эпизодами, характеризующимися быстрыми движениями глаз, подергиваниями и поджиманием конечностей — проявлениями, которые ранее были описаны как состояния, подобные фазе быстрого сна, у паука-скакунчика E. Arcuata (2B, 2C, видео №1).
Примеры проявлений REM-подобных состояний во время сна
У всех исследованных особей (n = 10) было зарегистрировано в общей сложности 109 эпизодов, подобных REM-фазе (примеры признаков на схеме ниже). В среднем на одного паука за ночь приходилось 10.9 ± 6.7 таких эпизодов, каждый из которых длился 82.6 ± 14.7 с (2E). Первый подобный эпизод возникал через 240.0 ± 184.7 мин (диапазон: от 67.5 до 600.7 мин) после начала сна, что указывает на значительную индивидуальную вариабельность времени наступления этих состояний. Примерно в 38.8% случаев наблюдалось поджимание конечностей, что сопоставимо с показателем, отмеченным для E. Arcuata (39.5%).
Порог возбуждения: различия в зависимости от функционального состояния
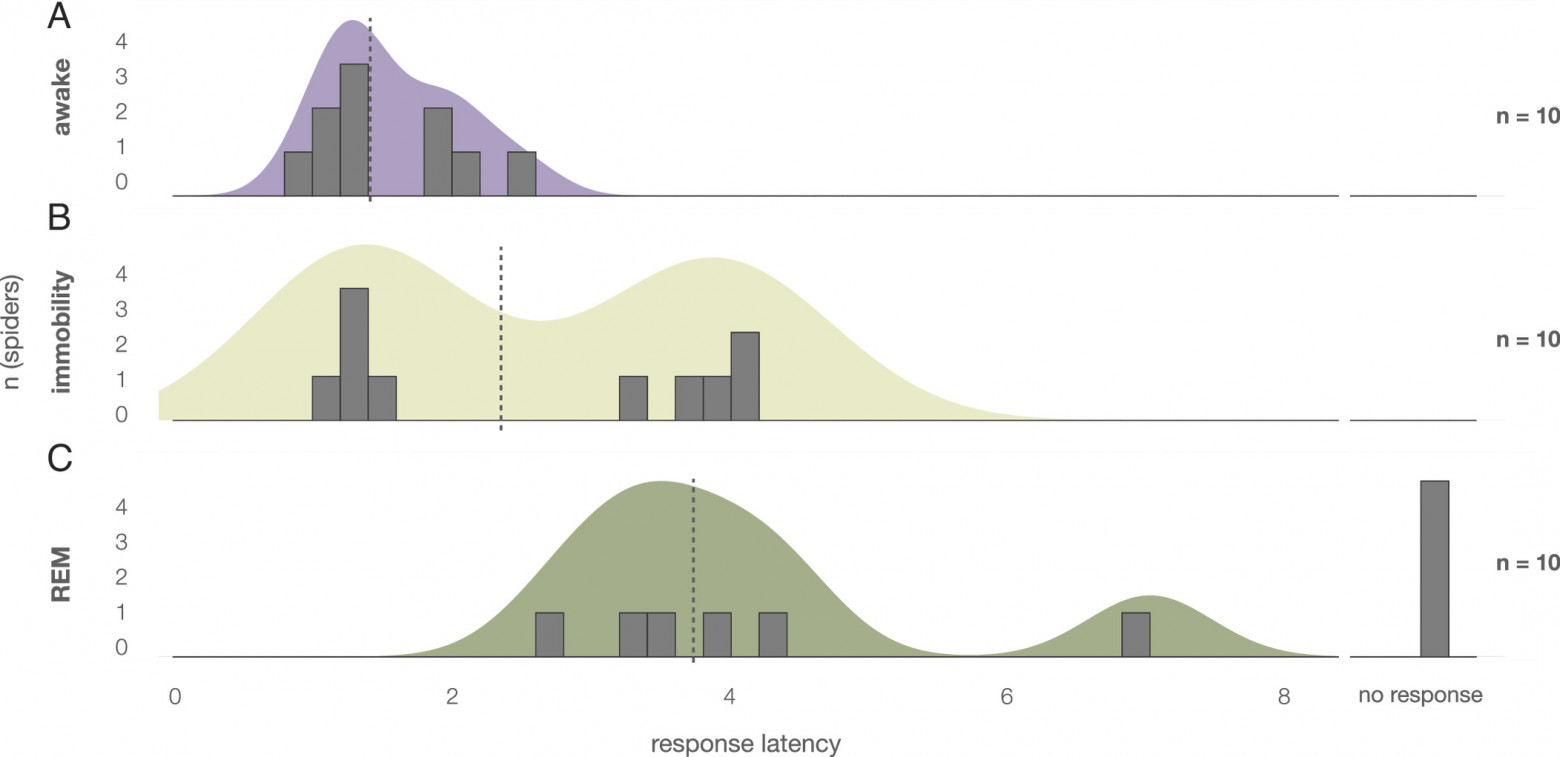
Изображение №3
Функциональное состояние оказывало существенное влияние на латентный период реакции на стандартизированный звуковой стимул, тогда как пол испытуемых — нет. У пауков, проявивших реакцию, самые короткие латентные периоды наблюдались в состоянии бодрствования (оценочное среднее ± стандартная ошибка: 1.69 ± 0.20 с), промежуточные — в состоянии покоя (2.71 ± 0.32 с), а самые длинные — во время REM-подобных эпизодов (4.27 ± 0.65 с) (видео №2). Апостериорные сравнения показали, что латентные периоды реакции были значимо длиннее в состоянии покоя, чем в состоянии бодрствования, и значимо длиннее во время REM-подобных эпизодов, чем в состоянии бодрствования. При сравнении REM-подобных эпизодов с состоянием покоя наблюдалась тенденция к увеличению латентных периодов, однако после введения поправки Бонферрони это различие не достигло уровня статистической значимости. С описательной точки зрения, в периоды, подобные фазе быстрого сна, также снижалась общая реактивность: все пауки реагировали на стимул в течение 10-секундного интервала наблюдения, находясь в состоянии бодрствования или покоя (10 из 10 в каждом случае), тогда как во время REM-подобных эпизодов отреагировали лишь 6 из 10 особей, а четыре паука не проявили реакции вовсе. Эти особи, не отреагировавшие в первый раз, продемонстрировали немедленную реакцию при повторном тестировании в состоянии бодрствования. Это подтверждает, что отсутствие реакции было обусловлено подавлением, связанным с функциональным состоянием, а не какими-либо сенсорными или моторными нарушениями. Реакции в состоянии покоя в целом занимали промежуточное положение и характеризовались неоднородностью: некоторые пауки реагировали так же быстро, как и в состоянии бодрствования, в то время как у других латентные периоды были сопоставимы с таковыми во время REM-подобных эпизодов.
Видео №2
Нарушение сна: свидетельства гомеостатического восстановления
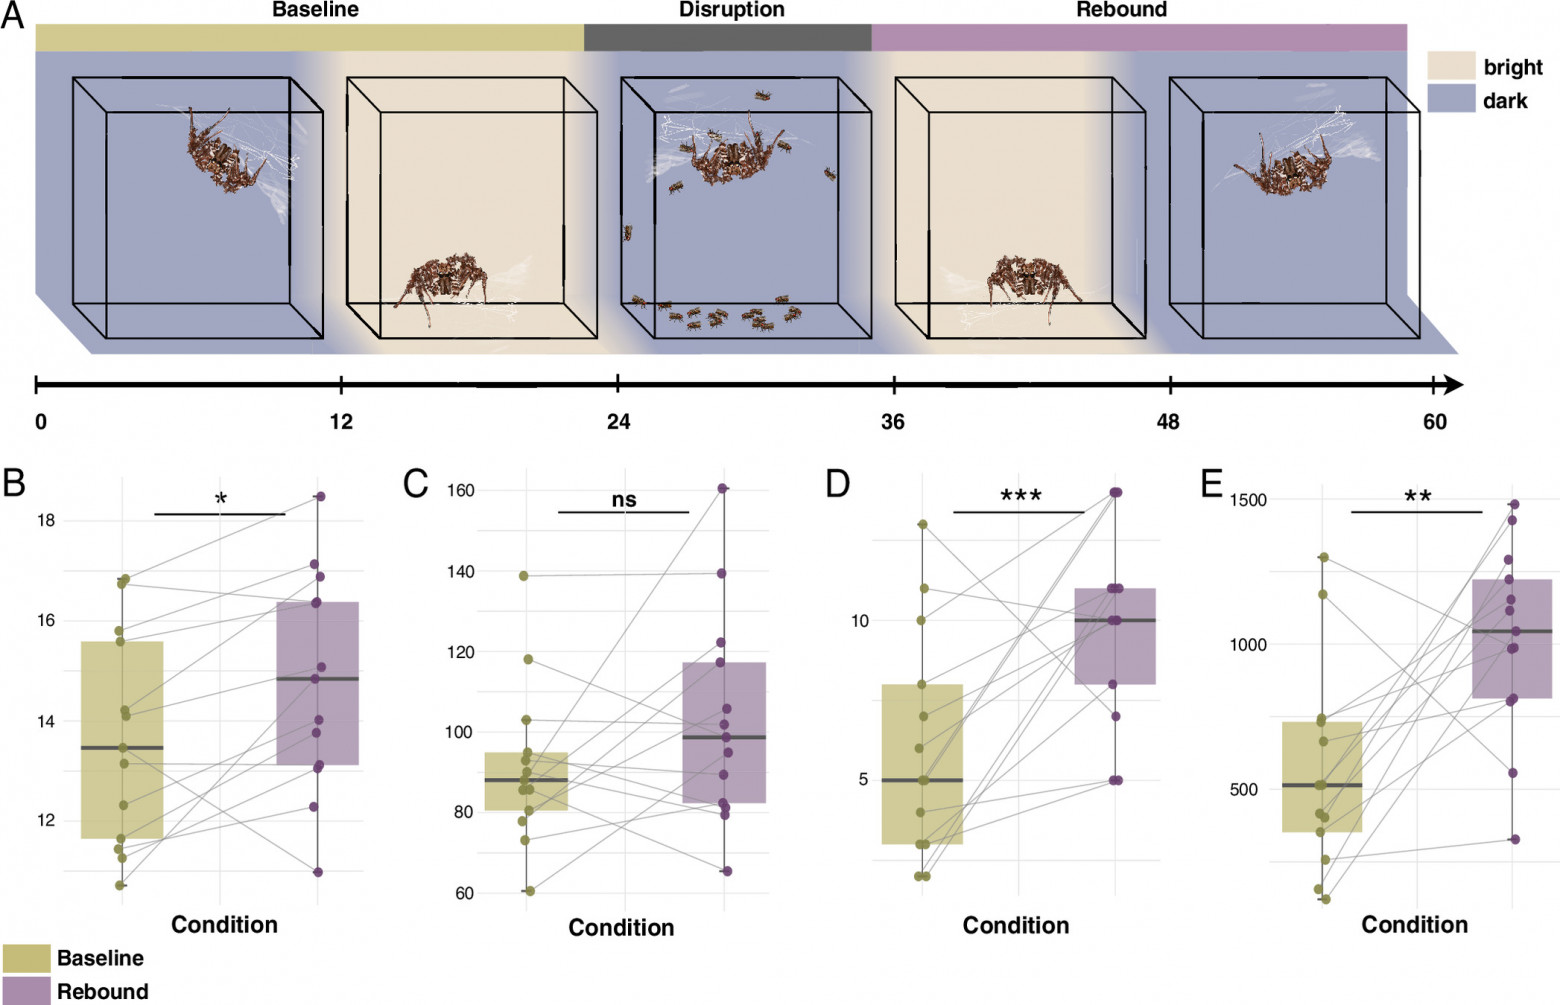
Изображение №4
Для проверки наличия гомеостатической регуляции пауков подвергли однократному нарушению сна в течение ночи, постоянно беспокоя их с помощью плодовых мушек Drosophila melanogaster (видео №3). Затем ученые количественно оценили поведенческие показатели в периоды до нарушения сна (базовый уровень) и во время последующего восстановления, уделив особое внимание общей продолжительности сна, REM-подобной активности, а также структуре эпизодов такой активности. После нарушения сна у пауков наблюдались компенсаторные изменения.
Видео №3
Общая продолжительность сна значимо увеличилась в период восстановления по сравнению с базовым уровнем (среднее значение ± стандартная ошибка: 13.64 ± 0.59 часа против 14.80 ± 0.60 часа; +8.5%; 4B). Хотя длительность отдельных эпизодов REM-подобной активности осталась неизменной (базовый уровень: 93.0 ± 4.4 с, n = 79 эпизодов; восстановление: 101.6 ± 4.2 с, n = 130 эпизодов; 4C), частота возникновения таких эпизодов в период восстановления значимо возросла (6.1 ± 1.0 против 10.0 ± 0.9 эпизода; +64.6%; 4D). Как следствие, общая продолжительность REM-подобной активности также значимо увеличилась по сравнению с базовым уровнем (9.4 ± 1.7 мин против 16.9 ± 1.5 мин; +79.8%; 4E). Более того, при расчете относительно периода сна доля времени, соответствующего REM-фазе, увеличилась с 1.18 ± 0.77% (базовый уровень) до 1.95 ± 0.68% (период восстановления), что соответствует относительному приросту на 65.1%. В контрольном эксперименте без внешних вмешательств продолжительность периода сна не увеличивалась на протяжении трех ночей подряд: в среднем она составляла 12.0 часов в первую и вторую ночи и 11.6 часов — в третью.
Все вышеописанные данные свидетельствуют о том, что пауки (как минимум исследованного вида Portia fimbriata) действительно обладают разными фазами сна, одна из которых проявляется характерными для REM-фазы особенностями.
Для более детального ознакомления с нюансами исследования рекомендую заглянуть в доклад ученых.
Эпилог
В рассмотренном нами сегодня труде ученые решили подробно изучить сон пауков, а именно пауков-скакунчиков Portia fimbriata, чтобы установить практические доказательства наличия у них REM-подобной фазы сна.
Сон является важной частью жизни фактически любого существа на Земле. Ценность сна проявляется в регуляторных процессах внутри организма в состоянии покоя, в частности нервной системы и мозга. Еще одной особенностью сна является наличие сновидений. Ранее проведенные исследования показали, что сны встречаются не только у людей, но и у множества других позвоночных. Список сновидцев из мира фауны продолжает расти с каждым новым исследованием. Однако все они являются позвоночными, по крайней мере именно им уделяется львиная доля научного интереса. Исследование сна и сновидение среди беспозвоночных довольно редки, ведь сопряжены с рядом сложностей. Но это не делает их вовсе невозможными.
Авторы рассмотренного нами сегодня труда использовали в своей работе данные и знания, полученные от предыдущих немногочисленных исследований сна беспозвоночных, и попытались расширить их путем длительных наблюдений и анализа.
В ходе исследования ученые наблюдали за 10 особями пауков-скакунчиков вида Portia fimbriata, сопоставляя их поведение в периоды бодрствования и отдыха (сна). Они обнаружили, что у пауков наблюдаются две четко различимые стадии сна. Один из этих процессов напоминает фазу быстрого сна (REM-сна), которая у людей связана с быстрыми движениями глаз, мышечной активностью и яркими сновидениями. Во время этой REM-подобной стадии пауки демонстрировали характерные движения глаз и подергивания мышц. Эти наблюдения позволяют предположить, что некоторые особенности сна, ранее изучавшиеся в основном у позвоночных, могут также наблюдаться у пауков. К сожалению, эти данные не могут подтвердить или опровергнуть наличие сновидений у пауков, но они говорят о том, что процесс сна у этих существ намного сложнее, чем считалось ранее.
Полученные результаты также открывают новые перспективы в поведенческих науках, нейробиологии и хронобиологии — дисциплине, изучающей биологические ритмы. Изучая сон у более широкого круга животных, ученые надеются выявить общие для разных видов черты и раскрыть фундаментальные биологические функции, которые сон мог выполнять на ранних этапах эволюции. Исследователи полагают, что в будущем научные изыскания должны выйти за рамки традиционных объектов изучения и охватить виды с необычными адаптациями или гораздо более простой нервной системой. Подобные сравнения могут показать, являются ли определенные механизмы сна широко распространенными в животном мире или же они развивались независимо в разных эволюционных линиях. Еще одна важная задача — изучение связи между сном и когнитивными способностями. Исследователи хотят понять, что происходит в мозгу пауков и насекомых во время сна и способствуют ли различные его стадии обучению и другим ментальным процессам. Значительное внимание уделяется и влиянию изменений окружающей среды. Исследователи планируют изучить, как изменение климата и антропогенные факторы, прежде всего искусственное ночное освещение, могут нарушать режим сна у пауков и других членистоногих.
Немного рекламы
Спасибо, что остаетесь с нами. Вам нравятся наши статьи? Хотите видеть больше интересных материалов? Поддержите нас, оформив заказ или порекомендовав знакомым, облачные VPS для разработчиков от $4.99, уникальный аналог entry-level серверов, который был придуман нами для Вас: Вся правда о VPS (KVM) E5-2697 v3 (6 Cores) 10GB DDR4 480GB SSD 1Gbps от $19 или как правильно делить сервер? (доступны варианты с RAID1 и RAID10, до 24 ядер и до 40GB DDR4).
Dell R730xd в 2 раза дешевле в дата-центре Maincubes Tier IV в Амстердаме? Только у нас 2 х Intel TetraDeca-Core Xeon 2x E5-2697v3 2.6GHz 14C 64GB DDR4 4x960GB SSD 1Gbps 100 ТВ от $199 в Нидерландах! Dell R420 – 2x E5-2430 2.2Ghz 6C 128GB DDR3 2x960GB SSD 1Gbps 100TB – от $99! Читайте о том Как построить инфраструктуру корп. класса c применением серверов Dell R730xd Е5-2650 v4 стоимостью 9000 евро за копейки?
Автор: Dmytro_Kikot

